
半不连续复制
半不连续复制
半不连续复制(Semiconservative replication)是DNA复制的基本模式,由沃森和克里克于1953年提出双螺旋结构时推测,并经梅塞尔森(Meselson)和斯塔尔(Stahl)在1958年用同位素标记实验证实。随后,冈崎令治(Reiji Okazaki)及其同事在1968年发现后随链上存在短DNA片段,即冈崎片段(Okazaki fragments),从而揭示了半不连续复制的分子细节。这一发现不仅解开了DNA复制如何实现双向性与高效性的谜题,也为后续研究DNA损伤修复、端粒维持和基因组稳定性奠定了基础。 ADSFAEQWER353423413434
一、历史发现与实验证据
 ADSFAEQWER353423413434
半不连续复制
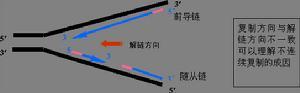
1958年,梅塞尔森和斯塔尔利用15N标记大肠杆菌DNA,通过密度梯度离心观察DNA复制后的密度变化,发现子代DNA中一条链来自亲代,另一条链全新合成,有力地支持了半保留复制模型。十年后,冈崎令治在电子显微镜下观察到,正在复制的DNA分支点附近存在大量短链DNA(约1,000-2,000核苷酸长),这些链随后被连接成长链。进一步实验表明:前导链(leading strand)连续合成,方向为5'→3';后随链(lagging strand)则反向合成,先形成冈崎片段再连接。这一过程被称为半不连续复制。 ADFASDFAF23RQ23R
二、分子机制与关键组分
半不连续复制的核心在于DNA聚合酶的5'→3'方向性限制。复制起始时,解旋酶(helicase)在复制原点(如原核生物的oriC)处解开双链,形成复制叉。单链结合蛋白(SSB)稳定单链模板。随后,引物酶(primase)合成短RNA引物。前导链模板连续提供3'端,DNA聚合酶III(原核)或聚合酶δ/ε(真核)从单一RNA引物开始持续合成。后随链模板方向为5'→3',需反复合成新引物,每次引物延伸产生冈崎片段。 ADFASDFAF23RQ23R
在原核生物大肠杆菌中,冈崎片段的延伸由DNA聚合酶III催化,长度约1,000-2,000 nt;真核生物中,由聚合酶δ催化,片段长度更短(100-200 nt)。随后,RNA引物被RNase H(真核)或DNA聚合酶I(原核)切除,缺口由DNA聚合酶I或聚合酶δ补齐,最后DNA连接酶催化磷酸二酯键形成,连接相邻冈崎片段。这一系列反应称为冈崎片段成熟。 ADSFAEQWER353423413434
三、半不连续复制的动力学与调控
复制叉的移动需要高度协调。解旋酶前方解链,后方由拓扑异构酶(如gyrase)消除扭转应力。后随链的模板必须形成环状结构,使聚合酶在物理上随着复制叉前进。在真核细胞中,复制叉处还装载有滑动夹(PCNA)和夹载器(RFC),以及检查点激酶(ATR/Chk1)监控复制压力。如果出现DNA损伤或核苷酸短缺,复制叉可能停滞或崩溃,需通过跨损伤合成或重组修复重启。端粒区域的后随链复制不完整,需端粒酶补充,这与衰老和癌症相关。 ADSFAEQWER353423413434
四、半不连续复制在不同生物体中的差异
原核生物:如大肠杆菌,仅一个复制原点,复制叉双向移动。引物酶DnaG、DNA聚合酶III全酶、解旋酶DnaB、连接酶LigA等组成复制体(replisome)。后随链的冈崎片段成熟较快。 ADSFAEQWER353423413434
真核生物:多个复制原点,复制由ORC复合物启动。聚合酶α/引物酶复合体合成引物,聚合酶δ延伸后随链,聚合酶ε延伸前导链。PCNA作为滑动夹,RFC作为夹载器。冈崎片段成熟涉及FEN1(或EXO1)去除引物,Lig1连接。真核后随链合成速度较慢,且与染色质组装偶联。 ADSFAEQWER353423413434
病毒:如SV40,仅依赖宿主机制,但T抗原充当解旋酶。线粒体DNA采用链置换与不对称复制方式,后随链合成延迟。
ADSFAEQWER353423413434
五、半不连续复制的生物学意义与展望
半不连续复制解决了DNA聚合酶不能从3'→5'方向延伸的问题,确保了前导链和后随链能同步合成,是遗传信息忠实传递的核心。该机制的高度保守性也体现了其进化优势。目前,单分子技术(光学镊子、荧光成像)正用于实时观测复制叉动力学,冷冻电镜揭示了复制体复合物的高分辨率结构。未来,理解半不连续复制如何在染色质环境中进行,以及其与表观遗传、DNA修复的交叉,将是重要方向。 ADFASDFAF23RQ23R
参考资料
- Meselson M, Stahl FW. The replication of DNA in Escherichia coli. Proc Natl Acad Sci USA. 1958;44(7):671-682.
- Okazaki R, Okazaki T, Sakabe K, Sugimoto K, Sugino A. Mechanism of DNA chain growth. I. Possible discontinuity and unusual secondary structure of newly synthesized chains. Proc Natl Acad Sci USA. 1968;59(2):598-605.
- Kornberg A, Baker TA. DNA Replication. 2nd ed. W.H. Freeman; 1992.
- Bell SP, Labib K. Chromosome duplication in Saccharomyces cerevisiae. Genetics. 2016;203(3):1027-1067.
- Burgers PMJ. Eukaryotic DNA polymerases in DNA replication and DNA repair. Chromosoma. 1998;107(4):218-227.
- Leman AR, Noguchi E. The replication fork: understanding the eukaryotic replication machinery and the challenges to genome duplication. Genes (Basel). 2013;4(1):1-32.
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。